19.1. Morfología y propiedades del eritrocito
El eritrocito es la célula más abundante de la sangre y la responsable exclusiva del transporte de gases.
Tiene forma de disco bicóncavo con un diámetro de unas 8 µm y un grosor máximo de unas 2 µm en los bordes. Esta geometría maximiza la relación superficie/volumen, lo que amplía el área disponible para el intercambio de gases, y confiere al eritrocito una elasticidad y capacidad de deformación que le permiten atravesar capilares cuyo diámetro (3–5 µm) es inferior al suyo propio.
El eritrocito maduro es anucleado y carece de mitocondrias, retículo endoplásmico y ribosomas. Esta ausencia de orgánulos le impide sintetizar proteínas o reparar los daños moleculares que se acumulan con el tiempo, lo que determina su vida media limitada de 120 días. A cambio, el espacio interior puede dedicarse casi íntegramente al almacenamiento de hemoglobina, que alcanza una concentración del 34% del volumen celular.
La membrana eritrocitaria tiene permeabilidades selectivas que son funcionalmente importantes.:
- Es muy permeable al CO₂, al Cl⁻, al HCO₃⁻ y a los protones H⁺, lo que facilita los intercambios gaseosos y iónicos necesarios para el transporte de CO₂.
- Es relativamente impermeable a los iones divalentes (Ca²⁺, Mg²⁺), lo que protege el interior celular de alteraciones en la homeostasis del calcio.
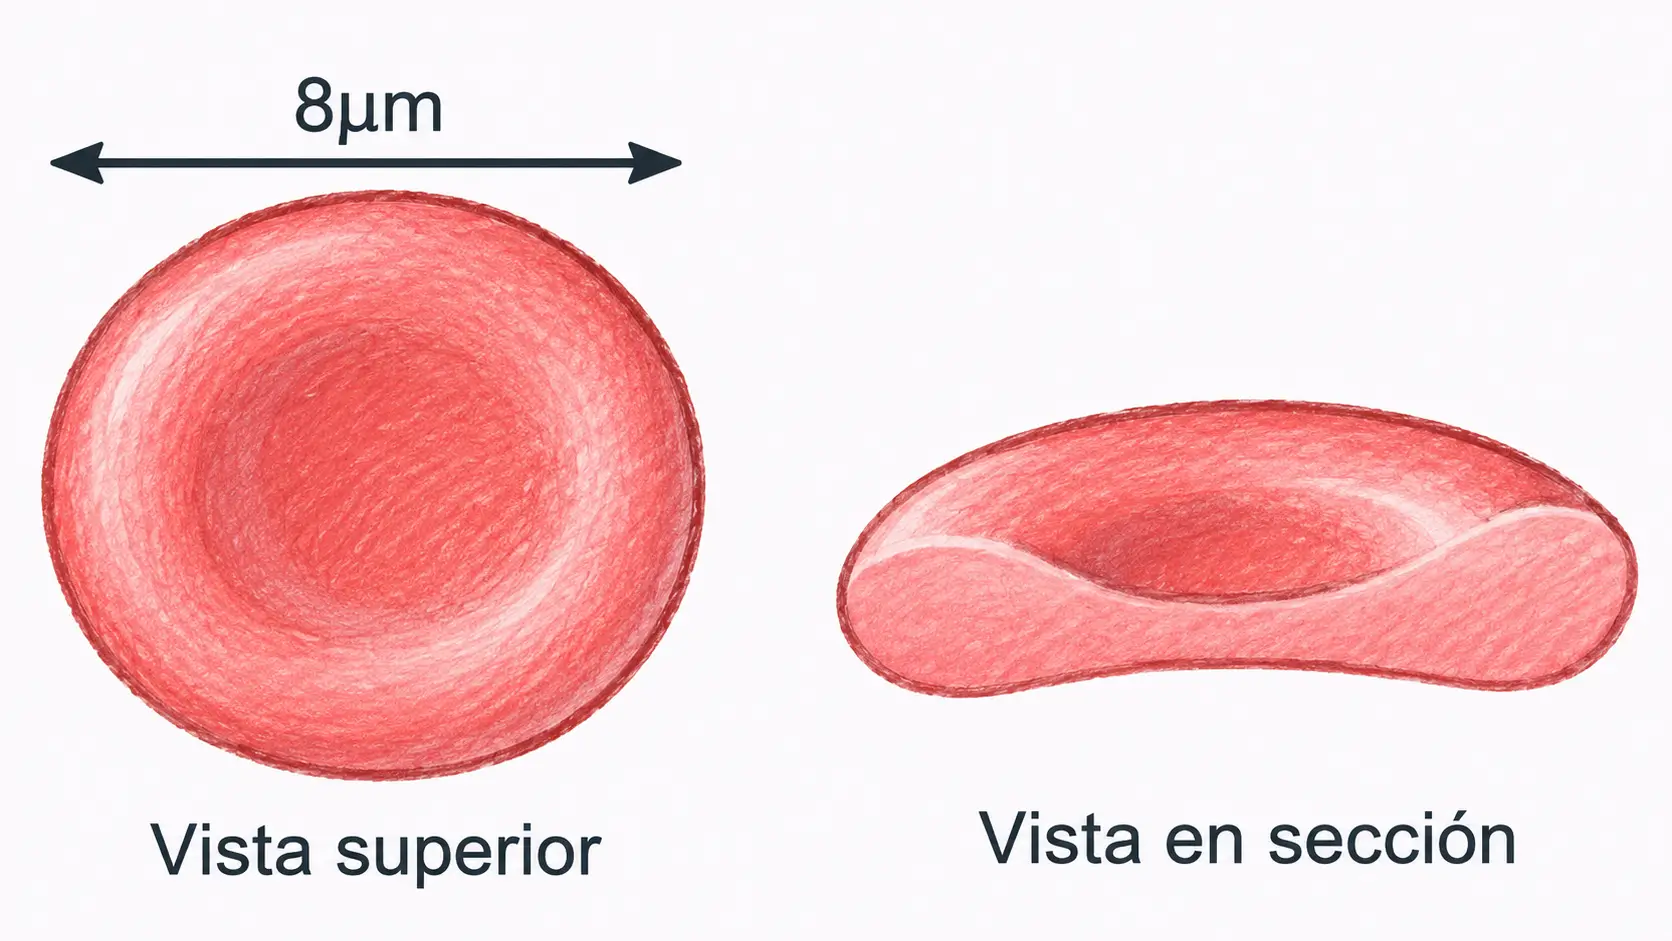
Eritrocito (glóbulo rojo): célula anucleada en forma de disco bicóncavo, de 8 µm de diámetro, cuya función exclusiva es el transporte de O₂ y CO₂. Es el elemento formes más abundante de la sangre (4,5–5,5 millones/µL) y contiene hemoglobina en una concentración del 34% de su volumen.
19.2. Eritropoyesis
19.2.1. Localización ontogénica
La localización de la eritropoyesis cambia a lo largo del desarrollo, como se describió en el Tema 18.
En el adulto, toda la eritropoyesis activa ocurre en la médula ósea roja de los huesos planos (esternón, costillas, vértebras, pelvis) y las epífisis proximales de los huesos largos (cabeza del fémur y húmero). En el resto de los huesos largos, la médula roja ha sido sustituida por médula amarilla (grasa) sin actividad eritropoyética en condiciones normales.
19.2.2. Secuencia de maduración
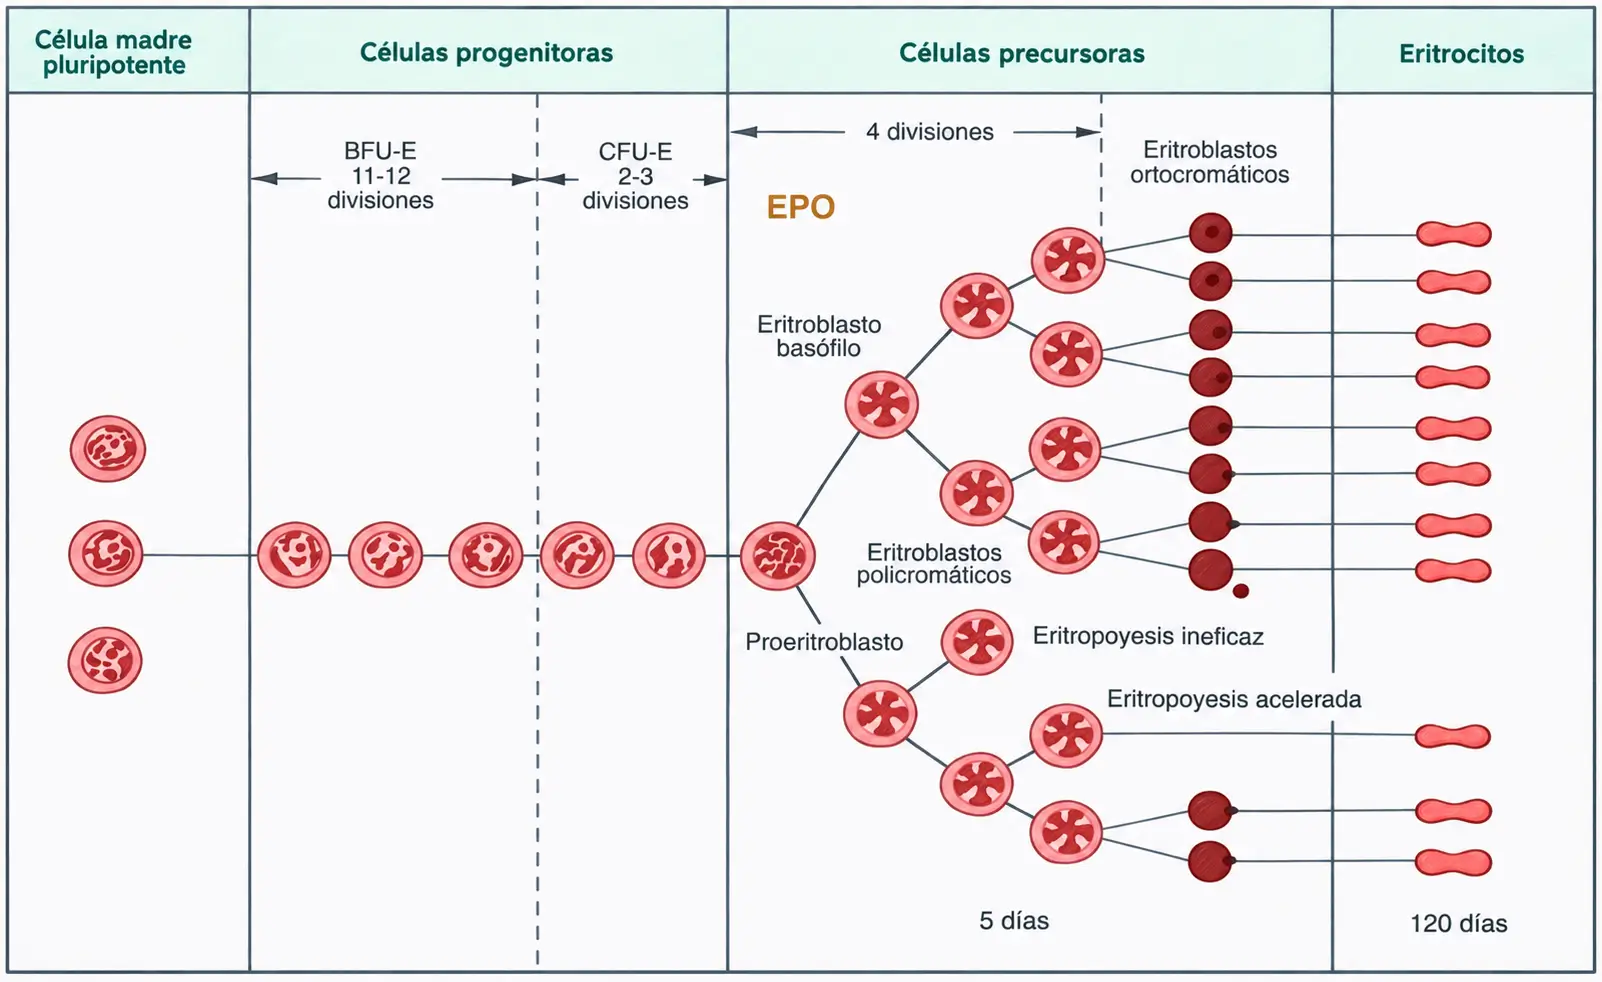
La eritropoyesis sigue una secuencia ordenada de etapas desde la célula madre hematopoyética (CMH) hasta el eritrocito maduro. Las etapas más relevantes son las siguientes.
- La CFU-E (unidad formadora de colonias eritroides) es el primer progenitor comprometido exclusivamente con la línea eritroide. Es la diana principal de la EPO.
- El proeritroblasto es la primera célula morfológicamente reconocible de la serie roja. Tiene núcleo grande y citoplasma basófilo. En él se inicia la síntesis de hemoglobina.
- Los eritroblastos (basófilo, policromático y ortocromático) son estadios sucesivos en los que el núcleo se condensa progresivamente mientras el citoplasma se va cargando de hemoglobina, lo que le hace perder la basofilia y ganar eosinofilia. El eritroblasto ortocromático expulsa su núcleo para dar lugar al reticulocito.
- El reticulocito es una célula anucleada que conserva restos de retículo endoplásmico rugoso, visible con tinciones supravitales como una red azulada (de ahí su nombre). En sangre periférica representa en condiciones normales el 0,5–1,5% de los eritrocitos totales. Completa la síntesis de hemoglobina en uno o dos días en la circulación y madura al eritrocito definitivo.
El porcentaje de reticulocitos en sangre periférica es el mejor indicador de la actividad eritropoyética de la médula ósea.
(1) Una reticulocitosis (>2%) indica eritropoyesis acelerada (hemorragia, hemólisis, respuesta a tratamiento).
(2) Una reticulocitopenia (<0,5%) indica eritropoyesis insuficiente (aplasia medular, déficit de EPO).
19.3. Hemoglobina
19.3.1. Estructura y síntesis
La hemoglobina es una proteína tetramérica formada por cuatro subunidades, cada una de las cuales consiste en una cadena polipeptídica (globina) unida a un grupo hemo. El grupo hemo es una porfirina (protoporfirina IX) que contiene un átomo de hierro en estado ferroso (Fe²⁺) en su centro, que es el que se une reversiblemente al oxígeno.
La síntesis del grupo hemo parte de la succinil-CoA (del ciclo de Krebs) y la glicina, que se condensan para formar un pirrol. Cuatro pirroles se unen para formar la protoporfirina IX, a la que se incorpora el Fe²⁺ para generar el grupo hemo. Cada grupo hemo se une a una cadena de globina para formar una subunidad, y cuatro subunidades se ensamblan para constituir la molécula completa de hemoglobina.
La estructura detallada del grupo hemo, la química de la unión Fe²⁺-O₂ y la síntesis de las cadenas de globina a nivel molecular corresponden a Bioquímica y Biología Molecular.
19.3.2. Tipos de hemoglobina
- La hemoglobina A (HbA) es la forma normal del adulto. Está formada por dos cadenas α y dos cadenas β (α₂β₂). Representa más del 95% de la hemoglobina en el adulto sano.
- La hemoglobina fetal (HbF) tiene dos cadenas α y dos cadenas γ (α₂γ₂). Las cadenas γ se unen menos al 2,3-bisfosfoglicerato (2,3-BPG) que las cadenas β del adulto, lo que hace que la HbF tenga mayor afinidad por el oxígeno que la HbA. Esta mayor afinidad es esencial para que el feto pueda captar oxígeno de la hemoglobina materna a través de la placenta. Tras el nacimiento, la producción de cadenas γ decrece progresivamente y es sustituida por cadenas β.
- La hemoglobina glucosilada (HbA1c) resulta de la unión no enzimática y estable de glucosa a la hemoglobina. En personas sanas, el porcentaje de HbA1c es inferior al 5,7%. Dado que los eritrocitos viven 120 días, la HbA1c refleja la glucemia media de los últimos 2–3 meses, lo que la convierte en el marcador estándar de control glucémico a largo plazo en pacientes diabéticos.
| Tipo | Cadenas | Cuándo predomina | Característica funcional |
|---|---|---|---|
| HbA | α₂β₂ | Adulto (>95% de la Hb total) | Hemoglobina de referencia. p50 ≈26 mmHg en condiciones normales. |
| HbF | α₂γ₂ | Feto y recién nacido (decrece tras el nacimiento) | Mayor afinidad por O₂ que HbA (las cadenas γ se unen menos al 2,3-BPG). Permite la captación de O₂ desde la Hb materna a través de la placenta. |
| HbA1c | α₂β₂ + glucosa unida | Siempre presente; aumenta con hiperglucemia | Hemoglobina glucosilada. Refleja la glucemia media de los últimos 120 días. Normal <5,7%. Marcador de control glucémico en diabetes. |
| HbS | α₂β₂(Glu6Val) | Drepanocitosis (patológica) | Polimeriza en hipoxia → eritrocito en hoz → hemólisis y oclusión microvascular. |
La drepanocitosis (anemia de células falciformes) es una hemoglobinopatía causada por la sustitución de un único aminoácido en la cadena β (Glu→Val en posición 6), que origina la hemoglobina S (HbS). En condiciones de baja pO₂, la HbS polimeriza y deforma el eritrocito en forma de hoz, aumentando su fragilidad y su tendencia a obstruir la microcirculación. Es la hemoglobinopatía hereditaria más frecuente en el mundo.
19.4. Regulación de la eritropoyesis
19.4.1. Mecanismo central: hipoxia → HIF-1α → EPO
La eritropoyesis está regulada principalmente por el grado de oxigenación tisular. Cuando la disponibilidad de oxígeno en los tejidos disminuye (hipoxia tisular), se activa una cascada molecular que incrementa la producción de eritrocitos.
El mecanismo molecular central es el factor inducible por hipoxia 1α (HIF-1α).
- En condiciones normales de oxigenación, el HIF-1α es continuamente sintetizado pero también continuamente degradado por prolil-hidroxilasas dependientes de oxígeno.
- En hipoxia, estas enzimas no pueden actuar porque carecen de sustrato (O₂), el HIF-1α se acumula, migra al núcleo y activa la transcripción de numerosos genes de respuesta a la hipoxia, entre los que destaca el gen de la eritropoyetina (EPO).
La EPO es una glucoproteína producida principalmente en las células peritubulares del riñón (y en menor medida en el hígado). Actúa sobre los progenitores eritroides de la médula ósea (especialmente la CFU-E y el proeritroblasto), estimulando su proliferación, diferenciación y supervivencia. Los primeros eritrocitos inmaduros aparecen en sangre periférica unos 4–5 días después del estímulo.
El eje hipoxia → HIF-1α → EPO → eritropoyesis es el regulador maestro de la masa eritrocitaria. Su comprensión explica por qué los deportistas de élite que se entrenan en altitud (hipoxia crónica) tienen más eritrocitos y mayor capacidad de transporte de O₂, y por qué la insuficiencia renal crónica produce anemia (pérdida de células productoras de EPO).
19.4.2. Factores dietéticos
La eritropoyesis requiere sustratos específicos que deben obtenerse de la dieta.
- Hierro: imprescindible para la síntesis del grupo hemo. Su deficiencia produce anemia ferropénica, caracterizada por eritrocitos más pequeños de lo normal (microcítica) y con menos hemoglobina (hipocrómica). Es la anemia más frecuente en el mundo.
- Aminoácidos: necesarios para la síntesis de las cadenas de globina. Su deficiencia en el contexto de desnutrición grave puede contribuir a la anemia.
- Vitamina B12 (cobalamina): necesaria para la síntesis de la forma activa del folato (tetrahidrofolato, THF), imprescindible para la síntesis de timidina y por tanto de ADN. Su deficiencia produce anemia perniciosa (anemia megaloblástica autoinmune por falta de factor intrínseco gástrico).
- Ácido fólico: participa directamente en la conversión de dUMP a dTMP, paso esencial en la síntesis de ADN. Su deficiencia también produce anemia megaloblástica.
Las deficiencias de vitamina B12 y folato provocan incapacidad de sintetizar ADN impide la división celular normal en los precursores eritroides, que continúan creciendo sin dividirse y producen eritrocitos grandes (macrocíticos) y frágiles.
- Ferropénica → microcítica hipocrómica (poco hierro → poco hemo → poca hemoglobina → eritrocito pequeño).
- Megaloblástica (B12 o folato) → macrocítica (no se puede dividir el ADN → célula grande que no se divide).
El VCM (volumen corpuscular medio) discrimina entre ambas.
19.5. Funciones del eritrocito
19.5.1. Transporte de oxígeno: curva de disociación y efecto Bohr
La hemoglobina se une al oxígeno de forma reversible a través del Fe²⁺ del grupo hemo. La relación entre la saturación de la hemoglobina (porcentaje de sitios de unión ocupados por O₂) y la presión parcial de oxígeno (pO₂) es sigmoide, lo que refleja la cooperatividad entre las cuatro subunidades, es decir, la unión de O₂ a una subunidad aumenta la afinidad de las demás.
La p50 es la pO₂ a la que la hemoglobina está saturada al 50%. Su valor normal es de aproximadamente 26 mmHg. Una p50 baja indica mayor afinidad (curva desplazada a la izquierda); una p50 alta indica menor afinidad (curva desplazada a la derecha).
En los pulmones, donde la pO₂ alveolar es de ≈100 mmHg, la hemoglobina alcanza una saturación del 97–98%. En los tejidos en reposo, la pO₂ intersticial es de ≈40 mmHg, y la saturación cae al 70–75%, liberando aproximadamente el 25% del O₂ transportado. Esta diferencia (20 mL O₂/dL en arterias − 15 mL O₂/dL en venas = 5 mL O₂/dL entregados) es la diferencia arteriovenosa de O₂ en reposo.
Varios factores desplazan la curva de disociación hacia la derecha (menor afinidad → mayor entrega de O₂ a los tejidos), constituyendo el efecto Bohr:
- Aumento de la pCO₂
- Descenso del pH (acidosis)
- Aumento de la temperatura
- Aumento del 2,3-bisfosfoglicerato (2,3-BPG)
Todos estos factores se acumulan en los tejidos metabólicamente activos, lo que hace que la hemoglobina libere más O₂ exactamente donde más se necesita. En los pulmones ocurre el efecto contrario: la eliminación de CO₂ y la alcalinización local desplazan la curva a la izquierda, favoreciendo la carga de O₂.
Efecto Bohr: desplazamiento de la curva de disociación de la oxihemoglobina hacia la derecha (menor afinidad por O₂) producido por el aumento de CO₂, el descenso del pH, el aumento de temperatura o el aumento del 2,3-BPG. Facilita la entrega de O₂ en los tejidos metabólicamente activos.
El efecto Bohr es un mecanismo de retroalimentación: los tejidos activos producen CO₂, H⁺ y calor, que reducen la afinidad de la hemoglobina por el O₂ y aumentan la entrega local. El músculo en ejercicio recibe más O₂ precisamente porque está produciendo más metabolitos.
19.5.2. Transporte de CO₂
El CO₂ producido en los tejidos se transporta hasta los pulmones por tres mecanismos en proporciones muy distintas.
- El mecanismo principal (≈70%) es el transporte como bicarbonato.
- El CO₂ difunde libremente al interior del eritrocito, donde la anhidrasa carbónica cataliza su hidratación formando ácido carbónico (H₂CO₃), que se disocia en HCO₃⁻ y H⁺.
- El HCO₃⁻ se exporta al plasma a través de un intercambiador aniónico (banda 3), que introduce Cl⁻ a cambio. Este proceso se denomina desplazamiento de cloruros (intercambio Cl⁻/HCO₃⁻).
- El H⁺ liberado es tamponado por la hemoglobina desoxigenada, que tiene mayor afinidad por los protones que la oxihemoglobina.
- El segundo mecanismo (≈25%) es el transporte como carboxihemoglobina (carbaminohemoglobina). El CO₂ se une directamente a los grupos amino terminales de las cadenas de globina, formando un carbamato. Este enlace es reversible y el CO₂ se libera en los pulmones.
- El tercer mecanismo (≈5%) es el transporte disuelto en plasma, siendo directamente proporcional a la presión parcial de CO₂.
En los pulmones, todos estos procesos se invierten.
- El HCO₃⁻ vuelve al eritrocito intercambiado por Cl⁻, se combina con H⁺ (liberado por la oxihemoglobina al unirse al O₂) para regenerar H₂CO₃.
- La anhidrasa carbónica convierte el bicarbonato en CO₂ y H₂O.
- El CO₂ difunde al alveolo y es eliminado por la ventilación.
19.5.3. Participación en el equilibrio ácido-base
La hemoglobina eritrocitaria contribuye activamente al mantenimiento del pH sanguíneo. Sus residuos de histidina en las cadenas de globina tienen una pK próxima al pH fisiológico, lo que los hace especialmente eficaces como tampón. Además, la anhidrasa carbónica intreritrocitaria participa en el sistema tampón bicarbonato-CO₂, el más importante del líquido extracelular.
El papel de la hemoglobina y el sistema bicarbonato en el equilibrio ácido-base, los tipos de acidosis y alcalosis y la interpretación de la gasometría arterial se desarrollan en T30 (Papel del riñón en el equilibrio ácido-base). Ver: Fisiología Médica I — T30
19.6. Valores de referencia y concepto de anemia
El número normal de eritrocitos en sangre periférica es de aproximadamente 4,5–5,5 millones/µL, con valores ligeramente superiores en varones. La concentración de hemoglobina normal es de 13–17 g/dL en varones y 12–16 g/dL en mujeres.
Anemia: descenso de la concentración de hemoglobina por debajo de los valores normales para el sexo y la edad. En la práctica clínica se define como hemoglobina <13 g/dL en varones y <12 g/dL en mujeres. No es una enfermedad en sí misma sino un signo que puede tener múltiples causas.
Un error frecuente es usar un solo parámetro para diagnosticar anemia. Un recuento normal de eritrocitos no descarta anemia si los eritrocitos son pequeños (microcíticos) o tienen poca hemoglobina (hipocrómicos). Los índices eritrocitarios, especialmente el volumen corpuscular medio (VCM), permiten clasificar la anemia y orientar su causa:
- VCM < 80 fL: anemia microcítica (causa más frecuente: ferropenia).
- VCM 80–100 fL: anemia normocítica (hemorragia aguda, anemia de enfermedad crónica, hemólisis).
- VCM > 100 fL: anemia macrocítica (déficit de B12 o folato, hepatopatía, hipotiroidismo).
| Tipo | VCM | Causas frecuentes | Mecanismo |
|---|---|---|---|
| Microcítica | <80 fL | Ferropenia (más frecuente), talasemia, anemia de enfermedad crónica | ↓ síntesis de hemoglobina → eritrocito pequeño e hipocrómico. El eritroblasto sigue dividiéndose sin poder acumular Hb. |
| Normocítica | 80–100 fL | Hemorragia aguda, hemólisis, anemia de enfermedad crónica, insuficiencia renal (↓ EPO) | Eritrocitos de tamaño normal pero en cantidad insuficiente. La producción está reducida o la destrucción aumentada. |
| Macrocítica | >100 fL | Déficit de vitamina B12 (anemia perniciosa), déficit de folato, hepatopatía, hipotiroidismo | ↓ síntesis de ADN → el eritroblasto no puede dividirse → célula grande y frágil (megaloblasto). |